3 Representar soluciones
Herramientas: representation-ga, accesible desde el portal.
Al terminar el recorrido básico de este capítulo podrás:
- distinguir el genotipo, el fenotipo y la decodificación, y decodificar un cromosoma dado;
- escribir y leer números en binario, y calcular la precisión que da un número de bits;
- escribir una asignación como un vector de enteros y un circuito como una permutación, y reconocer cuándo un cromosoma no es una permutación;
- explicar por qué un vector de reales no necesita decodificación y qué problema le queda;
- distinguir un cromosoma válido de una solución factible, y comprobar si una selección de objetos cabe en la mochila;
- elegir una representación según el tipo de decisión que describe el problema.
3.1 Genotipo y fenotipo BásicoB
Los problemas hablan de máquinas, ciudades o números reales, pero un algoritmo genético manipula cromosomas. ¿Cómo se conectan las dos cosas?
Un cromosoma es una cadena de genes, y cada gen toma un valor, su alelo (Mitchell, 1996/1998, apartado 1.3). Esa cadena es el genotipo: lo que el cruce y la mutación manipulan. La solución a la que corresponde es el fenotipo: lo que tiene sentido en el problema y lo que se evalúa (Talbi, 2009, p. 34, nota 25). El paso del uno al otro es la decodificación. La representación (o codificación) es el acuerdo completo: qué cromosomas existen y qué solución describe cada uno (Talbi, 2009, p. 40).
figuras/03-representacion.py, en el repositorio del libro.
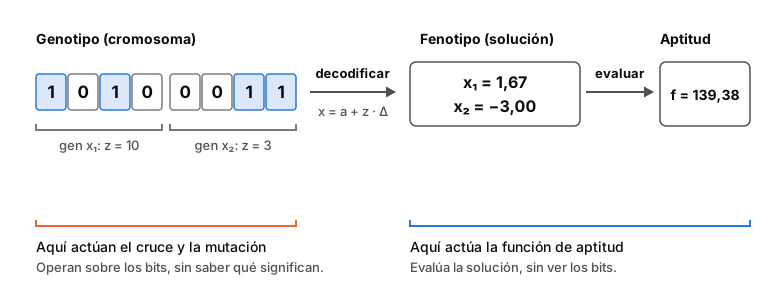
El esquema de la figura recoge una idea que usaremos todo el capítulo: el cruce y la mutación no saben qué significan los bits, y la función de aptitud no ve los bits. Todo lo que hay entre los dos, la representación, decide qué soluciones se pueden alcanzar, qué le ocurre a la solución cuando cambia un gen y si los operadores pueden producir cromosomas que no describen ninguna solución. Por eso, al elegir una representación hay que pensar a la vez cómo se evaluará la solución y cómo actuarán los operadores (Talbi, 2009, p. 35).
Veamos una decodificación completa. Buscamos el punto más bajo de la función de Himmelblau,
f(x_1, x_2) = (x_1^2 + x_2 - 11)^2 + (x_1 + x_2^2 - 7)^2,
dentro del cuadrado [-5, 5]^2. Cada variable se escribe con k = 4 bits. Esos cuatro bits se leen como un número entero z entre 0 y 15, y z se reparte a intervalos iguales entre −5 y 5. En la sección 3.2 veremos la fórmula con detalle.
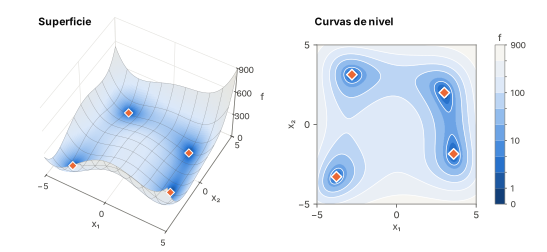
La figura 3.2 muestra la función. Tiene cuatro mínimos, todos con f = 0, cada uno en su valle. Entre ellos, cerca de (-0{,}27;\ -0{,}92), hay un máximo local con f \approx 181{,}6, y la función crece hacia las esquinas, hasta 890 en (5;\ 5).
figuras/03-himmelblau.py, en el repositorio del libro.
Datos. El cromosoma 1 0 1 0 0 0 1 1, con k = 4. Los cuatro primeros bits codifican x_1 y los cuatro siguientes, x_2. Entre dos valores representables consecutivos hay una distancia \Delta = 10/15 \approx 0{,}6667, y la fórmula es x = -5 + z\,\Delta.
Predice. ¿Cuánto valen z_1 y z_2? ¿Qué punto representa el cromosoma? ¿Cuánto vale f en ese punto?
Abrir: decodificar el cromosoma
Ver el resultado
El primer grupo, 1010, vale 8 + 2 = 10, y el segundo, 0011, vale 2 + 1 = 3. Los valores son:
x_1 = -5 + 10 \times 0{,}6667 \approx 1{,}6667, \qquad x_2 = -5 + 3 \times 0{,}6667 = -3.
El cromosoma representa el punto (1{,}6667;\ -3), donde f \approx 139{,}38. El mínimo de la función vale 0, así que este individuo es malo; la selección lo tratará como tal.Mostrar aquí la herramienta (decodificar el cromosoma)
Mutar un solo bit de ese cromosoma, por ejemplo el primero, da 0 0 1 0 0 0 1 1: z_1 pasa de 10 a 2 y x_1, de 1,6667 a −3,6667. Un bit ha movido el punto 8\,\Delta \approx 5{,}33, más de la mitad del lado de la caja. Esto no es un fallo, sino una consecuencia de la representación; volveremos a ello en la sección 3.8.
Con la misma representación (Himmelblau, [-5, 5]^2, k = 4), decodifica el cromosoma 0 0 0 0 1 1 1 1 y calcula f en ese punto. ¿Hay algún cromosoma que represente exactamente el punto (0, 0)?
Ver la solución
Los cuatro primeros bits dan z_1 = 0, así que x_1 = -5; los cuatro últimos dan z_2 = 15, así que x_2 = -5 + 15 \times 10/15 = 5. El punto es (-5, 5), una esquina de la caja, y f = (25 + 5 - 11)^2 + (-5 + 25 - 7)^2 = 19^2 + 13^2 = 530.
Para representar x = 0 haría falta z = 5/\Delta = 7{,}5, que no es un entero. Ningún cromosoma de este tipo representa el punto (0, 0); los más cercanos usan z = 7 o z = 8, que dan x = \mp 0{,}3333.- Avanza con Siguiente por las etapas Problema, Formalización, Codificación, Exploración y Validez. ¿En qué paso aparece el cromosoma y en cuál, el punto?
- Haz clic en un bit del cromosoma para cambiarlo y observa cómo se mueve el punto en el mapa. ¿Qué bits lo mueven mucho y cuáles, poco?
- Pulsa Cromosoma aleatorio varias veces y anota el valor de f de cada punto.
3.2 Binaria: enteros y reales BásicoB
Si cada gen es un bit, ¿cómo se escribe un número con ellos?
La representación binaria usa un alfabeto de dos símbolos. Es la forma natural de escribir decisiones de sí o no, como qué objetos entran en una mochila (Talbi, 2009, p. 36), y también se usa para escribir números (Goldberg, 1989, pp. 80–82; Mitchell, 1996/1998, apartado 5.2). Para un entero sin signo, los bits se leen como un número en base 2: si los k bits son b_1 b_2 \dots b_k, con b_1 el más significativo,
z = \sum_{j=1}^{k} b_j\, 2^{\,k-j}, \qquad z \in \{0, 1, \dots, 2^k - 1\}.
Para escribir un número real en un intervalo [a, b] se lleva ese entero al intervalo con una función lineal, de modo que 00…0 sea el extremo a y 11…1 sea el extremo b (Goldberg, 1989, p. 82):
x = a + z\,\Delta, \qquad \Delta = \frac{b - a}{2^k - 1}.
El valor Δ es la precisión de la representación: la distancia entre dos valores representables consecutivos. Si el problema tiene varias variables, cada una se escribe con sus propios k bits y los grupos se concatenan, como en la figura 3.1 (Goldberg, 1989, pp. 82–83). Con n variables y k bits por variable, el cromosoma tiene n \times k bits y el espacio de búsqueda tiene 2^{nk} cromosomas. Cada variable puede tomar solo 2^k valores.
Un detalle de notación: aquí dividimos por 2^k - 1 porque el mayor entero que se puede escribir es 2^k - 1, y así los dos extremos, a y b, son representables. Si se dividiera por 2^k, el extremo b no se alcanzaría nunca.
Un parámetro puede valer entre 2,5 y 20,5 y se escribe con 8 bits. ¿Qué valor representa el cromosoma 1 0 1 0 0 0 1 1? ¿Cuántos valores distintos se pueden escribir y qué distancia hay entre dos consecutivos?
Ver la solución
Los 8 bits, leídos como un solo entero, dan z = 128 + 32 + 2 + 1 = 163. Con k = 8 hay 2^8 = 256 valores y \Delta = (20{,}5 - 2{,}5)/255 \approx 0{,}0706. El valor es x = 2{,}5 + 163 \times 0{,}0706 \approx 14{,}006.
Compáralo con el ejemplo 3.1: son los mismos bits, pero leídos como una variable de 8 bits en lugar de dos de 4. Los cromosomas no significan nada por sí solos; lo que significan depende de la representación.3.3 Binaria: cuántos bits hacen falta BásicoB
Con k bits solo se pueden escribir 2^k valores por variable. ¿Qué se pierde por el camino?
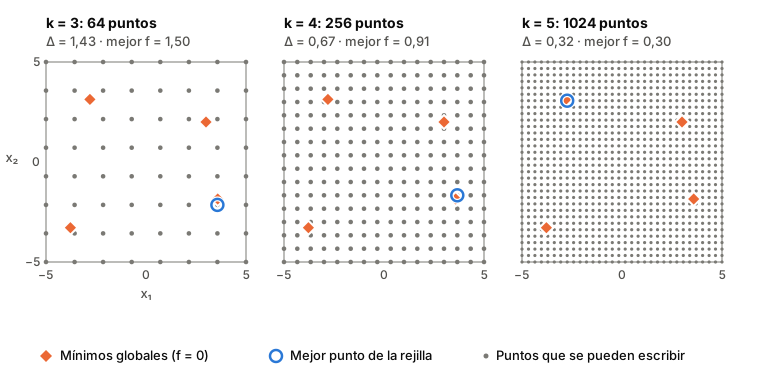
Se pierden todos los valores que quedan entre dos representables. La solución buscada, por ejemplo el mínimo de la función, puede no ser uno de los puntos que se pueden escribir. Para ver cuánto cambia esto con el número de bits, la figura 3.3 dibuja los puntos representables de la función de Himmelblau con k = 3, 4 y 5.
figuras/03-representacion.py, en el repositorio del libro.
Ver los datos de la figura
| Bits por variable k | Puntos | Δ | Mejor punto representable | f en ese punto |
|---|---|---|---|---|
| 3 | 64 | 1,4286 | (3,5714; −2,1429) | 1,504 |
| 4 | 256 | 0,6667 | (3,6667; −1,6667) | 0,9136 |
| 5 | 1 024 | 0,3226 | (−2,7419; 3,0645) | 0,2971 |
Cada bit que se añade a cada variable divide, aproximadamente por dos, la distancia entre puntos. Pero también multiplica por cuatro el número de cromosomas, porque son dos variables: 2^{2k}. La precisión se paga con un espacio de búsqueda mayor.
Datos. La función de Himmelblau en [-5, 5]^2 con k = 3, 4 y 5 bits por variable. El cromosoma de cada caso es solo una muestra para abrir la herramienta; lo que se pregunta no depende de él.
Predice. En cada caso, ¿cuántos cromosomas hay y cuánto vale Δ? ¿Llega el mejor punto representable al valor 0? ¿Está siempre en el mismo valle?
Abrir: k = 3 Abrir: k = 4 Abrir: k = 5
Ver el resultado
Hay 2^6 = 64, 2^8 = 256 y 2^{10} = 1\,024 cromosomas, con \Delta = 10/7 \approx 1{,}4286, 10/15 \approx 0{,}6667 y 10/31 \approx 0{,}3226. En ninguna rejilla cae un mínimo exactamente, así que el mejor punto representable no llega a 0: vale 1,504, 0,9136 y 0,2971. Aquí más bits dan un mejor resultado, pero no siempre en el mismo valle: con k = 3 y k = 4 el mejor punto está cerca del mínimo de la zona inferior derecha, y con k = 5, cerca del de la zona superior izquierda. La rejilla con más bits no es una versión refinada de la anterior, porque sus puntos no coinciden con los de aquella.Con k = 10 bits por variable la precisión ya es de una centésima (\Delta \approx 0{,}0098), el mejor punto representable vale 0,0005 y el cromosoma tiene 20 bits, que dan más de un millón de cromosomas distintos. Elegir k es un compromiso entre precisión y tamaño del espacio. Además, más bits no garantizan un mejor punto representable: con k = 7 el mejor vale 0,00026 y con k = 8, 0,0035, porque las dos rejillas son distintas.
Queremos que dos valores consecutivos de una variable en [-5, 5] estén separados como mucho 0,01. ¿Cuántos bits necesita cada variable? ¿Cuántos bits tiene entonces el cromosoma de la función de Himmelblau?
Ver la solución
Hace falta 10/(2^k - 1) \le 0{,}01, es decir, 2^k - 1 \ge 1\,000. Con k = 9, 2^9 - 1 = 511 y \Delta \approx 0{,}0196: no basta. Con k = 10, 2^{10} - 1 = 1\,023 y \Delta \approx 0{,}0098: basta. Cada variable necesita 10 bits y el cromosoma, 2 \times 10 = 20.- Cambia los Bits por variable (k), de 2 a 12, y fíjate en el panel que muestra Δ y el «Mejor de la rejilla». ¿A partir de qué k baja ese valor de 0,1?
- En el paso de Validez, comprueba que todas las cadenas caen dentro de la caja: la codificación binaria no puede salirse de ella.
- Cambia a Rastrigin, cuyo óptimo está en el origen, y busca algún k para el que la rejilla contenga el punto (0, 0). Para ayudarte, mira el ejercicio 3.1.
3.4 Entera: un número por decisión BásicoB
En un taller hay varias máquinas y cada tarea se hace en una sola de ellas. ¿Cómo se escribe un plan de trabajo como cromosoma?
En la representación entera, cada gen es un número entero de un rango, y los valores pueden repetirse. Sirve para los problemas en los que cada variable elige entre varias opciones, como las de asignación (Talbi, 2009, p. 36). Aquí, el gen i es la máquina que hace la tarea i. Con n tareas y m máquinas, el cromosoma tiene n genes y cada uno vale de 1 a m.
Como problema de ejemplo usamos 5 tareas y 3 máquinas. Cada máquina tarda un tiempo distinto en cada tarea:
| Tarea | Máquina 1 | Máquina 2 | Máquina 3 |
|---|---|---|---|
| 1 | 4 | 6 | 3 |
| 2 | 5 | 2 | 7 |
| 3 | 3 | 3 | 5 |
| 4 | 6 | 4 | 2 |
| 5 | 2 | 5 | 6 |
Las máquinas trabajan a la vez. La carga de una máquina es la suma de los tiempos de las tareas que se le asignan, y el makespan, C_{\max}, es la mayor de las cargas: el momento en que acaba la última máquina. Queremos minimizarlo. La restricción del problema es que cada tarea se haga en una máquina, y solo en una.
Con esta representación, esa restricción no hay que comprobarla: cada gen es un único número, así que cada tarea tiene exactamente una máquina. Se dice que el dominio del gen absorbe la restricción. Los 3^5 = 243 cromosomas posibles son todos asignaciones válidas.
Datos. Los tiempos de la tabla y el cromosoma 2 1 3 2 1: la tarea 1 va a la máquina 2, la 2 a la 1, la 3 a la 3, la 4 a la 2 y la 5 a la 1.
Predice. ¿Qué carga tiene cada máquina? ¿Cuánto vale el makespan?
Ver el resultado
| Máquina | Tareas | Carga |
|---|---|---|
| 1 | 2 y 5 | 5 + 2 = 7 |
| 2 | 1 y 4 | 6 + 4 = 10 |
| 3 | 3 | 5 |
Mostrar aquí la herramienta (asignación 2 1 3 2 1)
Los genes son números enteros, pero en este problema no son cantidades: la máquina 3 no está «más cerca» de la 2 que de la 1. Son etiquetas, es decir, valores nominales. En otros problemas, en cambio, el entero sí es una cantidad con orden, como las unidades de un lote o los operarios de un turno, y entonces un valor próximo suele dar una solución parecida (Eiben y Smith, 2015). De esta diferencia depende qué operadores tienen sentido, como veremos con detalle en la sección 7.3 del capítulo de mutación.
Parte del cromosoma 2 1 3 2 1 del ejemplo 3.4. (a) Pasa la tarea 4 a la máquina 3. ¿Cuál es el cromosoma nuevo y cuánto vale el makespan? (b) Pasa en cambio la tarea 1 a la máquina 3. ¿Y ahora? (c) ¿Cuál de los dos cambios es mejor?
Ver la solución
El cromosoma es 2 1 3 3 1. La tarea 4 deja la máquina 2 (carga 10 - 4 = 6) y pasa a la 3, donde tarda 2: carga 5 + 2 = 7. Las cargas son 7, 6 y 7, y el makespan, 7.
El cromosoma es 3 1 3 2 1. La tarea 1 deja la máquina 2 (carga 10 - 6 = 4) y pasa a la 3, donde tarda 3: carga 5 + 3 = 8. Las cargas son 7, 4 y 8, y el makespan, 8.
Es mejor el primero, con makespan 7. En los dos casos el resultado sigue siendo una asignación válida: la representación entera no tiene cromosomas inválidos.
- Haz clic en un gen del cromosoma para pasar su tarea a la máquina siguiente y fíjate en cómo cambian las cargas y el makespan.
- Intenta llegar al makespan óptimo, la línea discontinua, solo cambiando genes. ¿Cuántos cambios necesitas?
- Pulsa Instancia aleatoria para probar con otros tiempos.
3.5 Permutaciones: un orden BásicoB
Un viajante tiene que pasar una sola vez por cada una de n ciudades. ¿Sirve aquí un vector de enteros como el de las asignaciones?
Un vector de enteros permite repetir valores, y un circuito no puede repetir ciudades. La representación permutacional escribe un orden: cada gen es una ciudad y cada ciudad aparece exactamente una vez. El gen k es la ciudad que se visita en el lugar k, y el viajante vuelve de la última ciudad a la primera (Talbi, 2009, p. 36). Esta representación sirve para los problemas de secuenciación, planificación y rutas.
Aquí, la restricción de que cada ciudad se visite una vez no está en el dominio de cada gen, sino en la estructura de todo el cromosoma. Un cromosoma válido es el que cumple esa estructura, es decir, el que es una permutación. Por eso necesitan operadores propios, que mantengan la estructura, el cruce y la mutación de permutaciones que vimos en los capítulos 6 y 7.
Hay una segunda característica. Con n ciudades hay n! permutaciones, pero un mismo circuito se puede describir de muchas maneras: se puede empezar por cualquiera de sus n ciudades y recorrerlo en cualquiera de los dos sentidos. Hay entonces 2n cromosomas para cada circuito, y solo (n-1)!/2 circuitos distintos. Se llama redundancia a que varios cromosomas representen la misma solución.
Datos. Un problema con n = 6 ciudades (semilla 3) y el cromosoma 1 3 5 2 6 4. El circuito sale de la ciudad 1, pasa por la 3, la 5, la 2, la 6 y la 4, y vuelve a la 1.
Predice. ¿Cuántas permutaciones hay y cuántos circuitos distintos? ¿Cuántos cromosomas describen este circuito? ¿Cuánto mide el circuito 4 6 2 5 3 1?
Ver el resultado
Hay 6! = 720 permutaciones y 5!/2 = 60 circuitos distintos. Cada circuito lo describen 2n = 12 cromosomas: las 6 rotaciones del cromosoma, como 3 5 2 6 4 1, y las 6 de su sentido contrario, como 4 6 2 5 3 1. Todos describen la misma solución, con la misma longitud: 327,4. El circuito 4 6 2 5 3 1 es el recorrido contrario y mide lo mismo.
Ese 327,4 está lejos del óptimo, 239,6, que es el circuito 1 3 5 6 4 2. Cambiar de sitio dos ciudades, por ejemplo la 1 y la 2, da 2 3 5 1 6 4, que es otro circuito y mide 327,7.Mostrar aquí la herramienta (circuito 1 3 5 2 6 4)
- Con 6 ciudades, ¿es válido el cromosoma 1 3 5 3 6 4? Si no lo es, ¿qué le pasa? (b) Un procedimiento simple de reparación recorre el cromosoma y cambia cada ciudad que aparece por segunda vez por la menor de las que faltan. ¿Qué cromosoma sale? (c) Con n = 10 ciudades, ¿cuántas permutaciones hay y cuántos circuitos distintos?
Ver la solución
No es válido: la ciudad 3 aparece dos veces y la 2 no aparece. No describe ningún circuito.
La ciudad 3 aparece por segunda vez en el lugar 4, y la menor de las que faltan es la 2: sale 1 3 5 2 6 4, el circuito del ejemplo 3.5.
Hay 10! = 3\,628\,800 permutaciones y 9!/2 = 181\,440 circuitos distintos. Con solo 10 ciudades, el espacio de cromosomas ya tiene más de tres millones y medio de elementos.
- Haz clic en dos genes del cromosoma para intercambiarlos y comprueba que el resultado sigue siendo una permutación. ¿Cuánto cambia la longitud del circuito?
- Pulsa Cromosoma no válido para ver un cromosoma con una ciudad repetida y sigue el paso de Reparación.
- En la tabla de Cromosomas equivalentes, busca el cromosoma actual y comprueba que los doce miden lo mismo.
3.6 Real: el cromosoma es el punto BásicoB
Si el problema ya trabaja con números reales, ¿hace falta pasarlos a bits?
No. En la representación real, el cromosoma es un vector de números reales, con un gen por variable. Es la codificación natural de los problemas de optimización continua (Talbi, 2009, p. 37). Aquí el genotipo y el fenotipo coinciden: no hay decodificación, y el cromosoma de la función de Himmelblau es el propio punto (x_1, x_2). La precisión no depende de un número de bits: la limita la propia máquina (en la herramienta, los genes se guardan en centésimas).
Esto tiene ventajas. No hay que elegir k, no se pierden los valores que quedan entre dos representables y los operadores trabajan directamente con los valores del problema, como el cruce aritmético y la mutación gaussiana de los capítulos 6 y 7. En muchas aplicaciones, además, es la representación más natural; pero no hay normas rigurosas que digan cuál de las dos funciona mejor, y depende del problema y de los detalles del algoritmo (Mitchell, 1996/1998, apartado 5.2).
Datos. La función de Himmelblau en [-5, 5]^2 y el cromosoma real (3;\ 2).
Predice. ¿Cuánto vale f en el punto? ¿Puede escribirse con la binaria de k = 4 bits por variable?
Ver el resultado
f(3, 2) = (9 + 2 - 11)^2 + (3 + 4 - 7)^2 = 0: el punto es uno de los cuatro mínimos globales. Con el vector de reales, el cromosoma lo representa exactamente.
Con k = 4 bits, x_1 = 3 es representable (z_1 = 12), pero x_2 = 2 exigiría z_2 = 7/\Delta = 10{,}5, que no es un entero. Y no es cuestión de usar más bits: x_2 = 2 pide z = 7\,(2^k - 1)/10, y 2^k - 1 es siempre impar, así que esa cantidad nunca es un entero. En el ejemplo 3.3, ningún mínimo caía en la rejilla.Mostrar aquí la herramienta (el punto (3; 2))
El vector de reales tiene un problema que la binaria no tenía: un gen puede valer cualquier real, también uno que se salga del intervalo permitido. Veremos qué se hace entonces en la sección 3.11.
¿Qué representación elegirías para cada problema, y qué significa un gen? (a) Decidir qué productos de un catálogo de 20 se incluyen en un pedido. (b) Repartir 12 entregas entre 4 repartidores, de modo que cada entrega la haga uno solo. (c) Decidir en qué orden se procesan 8 trabajos en una máquina. (d) Ajustar tres coeficientes continuos de un modelo.
Ver la solución
- Vector de bits, de 20 genes: el gen i vale 1 si el producto i entra en el pedido (decisión de sí o no). (b) Vector de enteros, de 12 genes que valen de 1 a 4: el gen i es el repartidor de la entrega i (una categoría sin orden). (c) Permutación de 8 genes: el gen k es el trabajo que se procesa en el lugar k. (d) Vector de reales, de 3 genes: cada gen es un coeficiente. Es la representación natural, aunque también podría escribirse en binario, con la precisión que dé el número de bits.
3.7 Cromosomas válidos y soluciones factibles BásicoB
¿Toda cadena de bits describe algo que se puede llevar a cabo?
Hay que distinguir dos cosas. Un cromosoma es válido cuando tiene la estructura que exige la representación: en las permutaciones, cada ciudad una sola vez; en el vector de enteros, un valor del rango en cada gen. Y la solución que describe es factible cuando cumple las restricciones del problema (Talbi, 2009, p. 48). En las representaciones de las secciones anteriores las dos cosas coinciden. No ocurre así en el problema de la mochila.
En el problema de la mochila 0/1 hay n objetos, cada uno con un peso w_i y un valor v_i, y una mochila con capacidad W. Hay que decidir qué objetos se meten para maximizar el valor total sin pasarse de peso. Es uno de los problemas clásicos de la optimización combinatoria. Karp (1972, p. 95) incluyó entre los 21 problemas NP-completos de su artículo una versión de decisión, que no pregunta cuál es la mejor selección, sino si hay alguna cuyos pesos sumen exactamente una cantidad dada. Dicho de manera informal, para estos problemas no se conoce ningún método que encuentre siempre la solución exacta con un esfuerzo que crezca de forma polinómica con el tamaño de los datos. La representación natural es binaria, con un bit por objeto: el gen i vale 1 si el objeto i entra (Talbi, 2009, p. 36). Toda cadena de n bits es un cromosoma válido, porque describe una selección de objetos. Pero la selección es factible solo si \sum_i w_i x_i \le W.
Usaremos un problema con 6 objetos y capacidad W = 10:
| Objeto | 1 | 2 | 3 | 4 | 5 | 6 |
|---|---|---|---|---|---|---|
| Peso w_i | 3 | 5 | 2 | 4 | 6 | 1 |
| Valor v_i | 4 | 6 | 3 | 5 | 7 | 2 |
Datos. El problema de la tabla (W = 10) y tres cromosomas: 1 0 0 1 0 1, 1 1 0 1 1 0 y 1 0 1 1 0 1.
Predice. ¿Cuánto pesa y cuánto vale cada selección? ¿Cuáles son factibles? ¿Cuál es la mejor de las factibles?
Abrir: 100101 Abrir: 110110 Abrir: 101101
Ver el resultado
| Cromosoma | Objetos dentro | Peso | Valor | ¿Factible? |
|---|---|---|---|---|
| 1 0 0 1 0 1 | 1, 4, 6 | 8 | 11 | Sí |
| 1 1 0 1 1 0 | 1, 2, 4, 5 | 18 | 22 | No: se pasa 8 |
| 1 0 1 1 0 1 | 1, 3, 4, 6 | 10 | 14 | Sí, pesa justo W |
Mostrar aquí la herramienta (cromosoma 1 1 0 1 1 0)
El cromosoma 1 1 0 1 1 0 vale 22, más que el óptimo, 14, pero no cabe en la mochila. Si el algoritmo lo evaluara por su valor sin más, creería que es el mejor. No es un caso aislado: de los 32 cromosomas infactibles, 28 suman más valor que el óptimo, porque en general meter más objetos da más valor. Por eso los cromosomas infactibles son un problema real, y habrá que decidir qué hacer con ellos: lo veremos en la sección 3.10.
Cuando la representación absorbe las restricciones, como el vector de enteros de las asignaciones, esto no ocurre. Elegir la representación es, en parte, decidir cuántas restricciones se resuelven al escribir el cromosoma y cuántas quedan para después.
Con el problema del ejemplo 3.7, ¿son factibles los cromosomas 0 1 1 0 0 1 y 0 1 1 0 1 1? ¿Cuánto valen? ¿Es válido un cromosoma de 7 bits?
Ver la solución
El cromosoma 0 1 1 0 0 1 mete los objetos 2, 3 y 6: pesa 5 + 2 + 1 = 8 \le 10 y vale 6 + 3 + 2 = 11. Es factible.
El cromosoma 0 1 1 0 1 1 mete los objetos 2, 3, 5 y 6: pesa 5 + 2 + 6 + 1 = 14 > 10 y vale 6 + 3 + 7 + 2 = 18. No es factible: se pasa 4.
Un cromosoma de 7 bits no es válido: el problema tiene 6 objetos y haría falta un gen por objeto. Es un error de estructura, no de restricción.- Haz clic en un gen para cambiarlo y observa en la mochila qué objetos entran y cuándo aparece el exceso sobre la capacidad.
- En el paso de Formalización, lee cuántos cromosomas hay y cuántos son factibles.
- Pulsa Instancia aleatoria varias veces y compara la proporción de factibles. ¿De qué crees que depende?
3.8 Binaria: saltos de Hamming y código Gray AvanzadoA
Al mutar un bit, el punto debería cambiar poco. ¿Es así en la representación binaria de los reales?
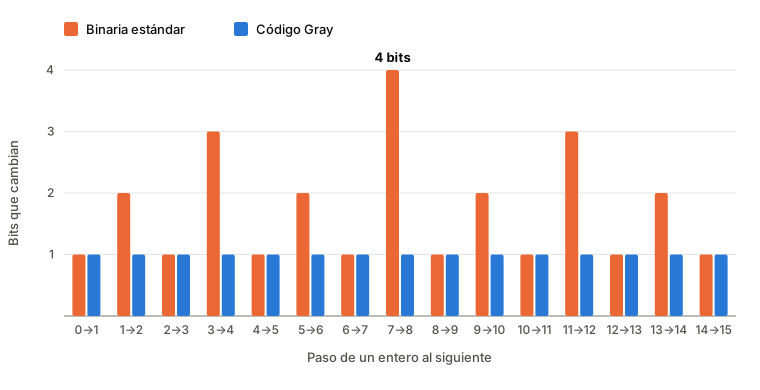
Una buena representación debería tener la propiedad de proximidad: dos soluciones parecidas deberían tener cromosomas parecidos, y al revés, donde «parecidos» se mide con los operadores que se aplican (Talbi, 2009, p. 43). Con operadores que cambian bits, la binaria estándar no la cumple. Tomemos los enteros 15 y 16. Son vecinos, pero en 5 bits se escriben 0 1 1 1 1 y 1 0 0 0 0: hay que cambiar los cinco bits para pasar de uno a otro (Talbi, 2009, p. 43). A este salto entre vecinos con cromosomas lejanos se le llama salto de Hamming (Hamming cliff). Y al revés, como vimos en el ejemplo 3.1, cambiar el bit más significativo de una variable mueve el punto algo más de media caja.
El código Gray reflejado se construye para que dos enteros consecutivos difieran siempre en un solo bit (Mitchell, 1996/1998, apartado 5.2). Para pasar un número de binario estándar b_1 b_2 \dots b_k a Gray, el primer bit se copia y cada uno de los siguientes es el «o exclusivo» (\oplus) de dos bits consecutivos del binario:
g_1 = b_1, \qquad g_j = b_{j-1} \oplus b_j \quad (j = 2, \dots, k).
El \oplus vale 1 si los dos bits son distintos y 0 si son iguales. Para decodificar se hace al revés: b_1 = g_1 y b_j = b_{j-1} \oplus g_j. Después se lee b como un entero y se aplica la fórmula de la sección 3.2.
| Entero z | 5 | 6 | 7 | 8 |
|---|---|---|---|---|
| Binario estándar | 0101 | 0110 | 0111 | 1000 |
| Gray | 0111 | 0101 | 0100 | 1100 |
figuras/03-representacion.py, en el repositorio del libro.
Ver los datos de la figura
Bits que cambian al pasar de z a z + 1, con k = 4:
| Paso | 0→1 | 1→2 | 2→3 | 3→4 | 4→5 | 5→6 | 6→7 | 7→8 | 8→9 | 9→10 | 10→11 | 11→12 | 12→13 | 13→14 | 14→15 |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| Estándar | 1 | 2 | 1 | 3 | 1 | 2 | 1 | 4 | 1 | 2 | 1 | 3 | 1 | 2 | 1 |
| Gray | 1 | 1 | 1 | 1 | 1 | 1 | 1 | 1 | 1 | 1 | 1 | 1 | 1 | 1 | 1 |
Datos. La función de Himmelblau con k = 4, y el punto (-0{,}3333;\ -0{,}3333), que corresponde a z_1 = z_2 = 7. En binario estándar se escribe 0 1 1 1 0 1 1 1; en Gray, 0 1 0 0 0 1 0 0. Su vecino de la rejilla en x_1 es el punto con z_1 = 8.
Predice. ¿Cuántos bits hay que cambiar en cada código para pasar de z_1 = 7 a z_1 = 8?
Abrir: binario estándar Abrir: código Gray
Ver el resultado
En binario estándar, 0 1 1 1 pasa a 1 0 0 0: hay que cambiar 4 bits. En código Gray, 0 1 0 0 pasa a 1 1 0 0: basta 1 bit, el primero. Los dos cromosomas representan el mismo punto, con f \approx 178{,}1.
Pero en Gray no todo es mejor: de los ocho cromosomas a un bit de distancia, solo cuatro (el 50 %) son vecinos de la rejilla; en binario estándar son dos (el 25 %). Por ejemplo, si en 0 1 0 0 se cambia el segundo bit, sale 0 0 0 0, que es z = 0, en el otro extremo de la caja.Mostrar aquí la herramienta (código Gray)
El código Gray garantiza que el vecino de la rejilla está siempre a un bit, pero no que un bit lleve siempre a un vecino. Midiendo con 1 000 puntos al azar, la herramienta cuenta, con k = 4, 2,9 genes de media hasta el vecino de la rejilla en estándar y 1 en Gray; en cambio, la proporción de cromosomas a un bit que son vecinos de la rejilla sube de un 25 % a un 48 %, no a un 100 %. Gray reduce los saltos de Hamming, pero no los elimina. Talbi señala que su principal inconveniente es que maneja mal los rangos dinámicos (Talbi, 2009, p. 43). Mitchell lo menciona como una de las extensiones de la codificación binaria (Mitchell, 1996/1998, apartado 5.2).
- Escribe el entero z = 5 en 4 bits en código Gray. (b) ¿Qué entero representa el código Gray 1 1 0 0? (c) Escribe 15 y 16 en 5 bits, en binario estándar y en Gray, y cuenta cuántos bits cambian en cada código.
Ver la solución
En binario, 5 es 0101. El primer bit se copia (0); el segundo es 0 \oplus 1 = 1; el tercero, 1 \oplus 0 = 1; el cuarto, 0 \oplus 1 = 1. En Gray es 0 1 1 1.
El primer bit se copia (1); el siguiente es 1 \oplus 1 = 0; el siguiente, 0 \oplus 0 = 0; y el último, 0 \oplus 0 = 0. En binario es 1000, que es 8.
En estándar, 15 es 01111 y 16 es 10000: cambian los 5 bits. En Gray, 15 es 01000 y 16 es 11000: cambia 1 bit.
- En la tabla de Localidad, compara las columnas Genes hasta el vecino de la rejilla y Vecinos de la rejilla de la binaria estándar y de la Gray. El valor en negrita es el de este punto; el de entre paréntesis, la media con 1 000 puntos al azar.
- Sube los Bits por variable (k) de 4 a 8. ¿Cómo cambia la media de genes hasta el vecino de la rejilla en la estándar? ¿Y en Gray?
- Pulsa Punto aleatorio varias veces y busca puntos en los que la estándar tenga que cambiar 1 bit y otros en los que tenga que cambiar muchos.
3.9 Matriz binaria: una restricción que no se absorbe AvanzadoA
El mismo problema de asignación se puede escribir con bits. ¿Qué cambia si hay un bit por cada pareja tarea–máquina?
En la matriz binaria, el cromosoma tiene un bit y_{ij} por cada tarea i y cada máquina j, con y_{ij} = 1 si la tarea i se hace en la máquina j. Con 5 tareas y 3 máquinas, son 15 bits. Es una representación binaria, así que sirven los operadores de la binaria. Pero la restricción de que cada tarea tenga exactamente una máquina ya no se absorbe: nada impide que una tarea no tenga ningún 1 (no se hace) o varios (se hace en varias máquinas). Hay que comprobarla, como en la mochila.
Es el caso de la sección 3.7, pero más extremo. De los 2^{15} = 32\,768 cromosomas, solo 3^5 = 243 son asignaciones factibles: el 0,74 %. El resto no describe un plan de trabajo.
Datos. Los tiempos del ejemplo 3.4 y la matriz binaria con un grupo de tres bits por tarea: 0 0 0 | 1 1 0 | 0 0 1 | 0 1 0 | 1 0 0. Cada grupo da, para esa tarea, los bits de las máquinas 1, 2 y 3. Para repararla se procede tarea a tarea: si no tiene ningún 1, va a la máquina más rápida para ella; si tiene varios, se queda con el de la máquina más rápida de entre ellos.
Predice. ¿Es factible? ¿Qué tareas incumplen la restricción? ¿Qué asignación sale al repararla y cuánto vale su makespan?
Abrir: matriz infactible y reparación
Ver el resultado
No es factible. La tarea 1 no tiene máquina (000) y la tarea 2 está en dos (110); las otras tres cumplen la restricción. La violación total es v = |0 - 1| + |2 - 1| = 2.
Al repararla, la tarea 1 va a la máquina 3, la más rápida para ella (tarda 3), y la tarea 2 se queda en la máquina 2 (tarda 2, frente a 5 en la máquina 1). Sale la asignación 3 2 3 2 1, con cargas 2, 6 y 8 y makespan 8. El óptimo es 5.
Además, esta asignación no es la imagen de una sola matriz: de las 32 768 matrices, 250 se reparan en 3 2 3 2 1. Solo una de ellas es factible.Mostrar aquí la herramienta (matriz y reparación)
La tabla de la página «Comparar codificaciones» resume el contraste con el mismo problema y la asignación 2 1 3 2 1 del ejemplo 3.4:
| Vector de enteros | Matriz binaria | |
|---|---|---|
| Cromosoma | 5 enteros | 15 bits |
| Espacio de búsqueda | 3^5 = 243 | 2^{15} = 32\,768 |
| Cromosomas factibles | 100 % | 0,74 % |
| Cromosomas que dan la misma asignación | 1 | 20 (media de todas las asignaciones: 134,8) |
| Vecinos a un gen | 10 | 15 |
| Vecinos que son asignaciones | 100 % | 0 % |
| Vecinos que repiten la asignación tras reparar | 0 % | 33 % |
Con el vector, cualquier cambio de un gen es otra asignación; con la matriz, un cambio de un bit nunca deja una asignación factible, y un tercio de las veces la reparación devuelve la misma asignación, con lo que el algoritmo no avanza. Con la matriz, cada operador va a necesitar un tratamiento de los cromosomas infactibles. La sección 3.10 enumera las estrategias.
Con los tiempos del ejemplo 3.4, repara la matriz 1 1 1 | 0 0 0 | 0 1 0 | 0 0 1 | 0 0 0 con la regla del ejemplo 3.9. ¿Qué asignación sale?
Ver la solución
La tarea 1 tiene tres 1; se queda con la máquina más rápida de las tres, la 3 (tiempo 3). La tarea 2 no tiene ninguno; va a su máquina más rápida, la 2 (tiempo 2). Las tareas 3 (máquina 2) y 4 (máquina 3) cumplen la restricción. La tarea 5 no tiene ninguno; su máquina más rápida es la 1 (tiempo 2). La asignación es 3 2 2 3 1.
Es una de las dos asignaciones óptimas de este problema. Las cargas son 2, 5 y 5: la máquina 1 hace la tarea 5 (tiempo 2), la 2 hace las tareas 2 y 3 (2 + 3 = 5) y la 3 hace las tareas 1 y 4 (3 + 2 = 5). El makespan es 5.- Comprueba en la tabla del espacio de búsqueda los valores de la tabla de esta sección: tamaños, porcentaje de factibles y redundancia.
- Pulsa Instancia aleatoria y comprueba cómo cambia el número de cromosomas; ¿cuántos más son infactibles al aumentar tareas y máquinas?
- Abre el nombre de cada codificación para ver su página con la misma instancia y la misma asignación.
3.10 Qué hacer con los cromosomas infactibles AvanzadoA
Si un cromosoma representa una solución que no cumple las restricciones, ¿qué se hace con él?
Las revisiones clásicas sobre el tratamiento de las restricciones en los algoritmos evolutivos agrupan las estrategias de formas algo distintas (Coello Coello, 2002): Michalewicz y Schoenauer, por ejemplo, usan cuatro categorías y tratan la reparación dentro de los métodos que distinguen entre soluciones factibles e infactibles (Michalewicz y Schoenauer, 1996, apartado 3). Seguiremos la clasificación de Talbi, que distingue cinco (Talbi, 2009, p. 48), y la llevaremos a la mochila, donde se pasó de peso el cromosoma 1 1 0 1 1 0 de la sección 3.7.
- Rechazar. Los cromosomas infactibles se descartan; por eso se llama también pena de muerte (death penalty) (Talbi, 2009, p. 49; Coello Coello, 2002, apartado 2.7). Solo es razonable si son muy pocos, y no aprovecha la información que dan los infactibles (Talbi, 2009, p. 49), que ya Richardson et al. (1989) recomendaban no tirar sin más. En la mochila del ejemplo, la mitad de los cromosomas son infactibles; en la matriz binaria de la sección 3.9, el 99 %.
- Penalizar. El cromosoma infactible se acepta, pero su aptitud se castiga según cuánto incumple la restricción (Talbi, 2009, pp. 49–50). Es la estrategia más usada (Talbi, 2009, p. 49; Coello Coello, 2002, apartado 2). En la mochila, con e = \max(0, \text{peso} - W) el exceso de peso, una penalización lineal es aptitud = valor - \lambda\, e, y una cuadrática, valor - (\lambda\, e)^2. Si λ es muy pequeño, el algoritmo termina con soluciones infactibles; si es muy grande, se queda en soluciones factibles que no son óptimas (Talbi, 2009, p. 50). La elección de λ y las variantes de la penalización se estudian en la sección 4.7.
- Reparar. Un procedimiento, casi siempre una heurística voraz, transforma el cromosoma infactible en uno factible (Talbi, 2009, pp. 52–53; Coello Coello, 2002, apartado 4). Solo se aplica a los infactibles: a un cromosoma factible no se le toca. En la mochila, se sacan objetos hasta que quepan. La reparación voraz saca primero el de peor relación valor/peso; la aleatoria, uno cualquiera. Son las dos que compararon Michalewicz y Arabas (1994, p. 138) en este problema. Chu y Beasley (1998, p. 74) usaron una reparación en dos fases: después de sacar objetos, se meten, por orden de mejor relación, los que todavía quepan. Los procedimientos de reparación son específicos de cada problema (Talbi, 2009, p. 53).
- Decodificar. El cromosoma no es la solución, sino unas instrucciones con las que un decodificador construye siempre una solución factible (Coello Coello, 2002, apartado 3.6; Talbi, 2009, p. 53). En la mochila, el decodificador recorre los genes en orden, y cada 1 significa «intenta meter este objeto»: entra solo si cabe.
- Preservar. La representación y los operadores se diseñan de modo que solo produzcan soluciones factibles (Coello Coello, 2002, apartado 3; Talbi, 2009, p. 53). Es lo que hacen los operadores de permutaciones de los capítulos 6 y 7. Es una estrategia a medida de cada problema.
¿Cuál funciona mejor? Depende del problema. En la mochila, Michalewicz y Arabas (1994, pp. 140–141) compararon penalizaciones, reparaciones y decodificadores. Cuando la capacidad era pequeña y cabían pocas selecciones, las penalizaciones no llegaban a soluciones factibles y ganaba la reparación voraz; con una capacidad mayor, ganaba la penalización más suave, la logarítmica.
Datos. La mochila de la sección 3.7 (W = 10) y el cromosoma infactible 1 1 0 1 1 0, que pesa 18 y vale 22. Los dos tratamientos con penalización usan λ = 2. En la reparación aleatoria, los números sorteados son 0,62; 0,00 y 0,52, y cada uno elige cuál de los k objetos que quedan dentro se saca: el número \lfloor r\,k \rfloor, contando desde 0 en el orden de los genes.
Predice. ¿Qué aptitud da cada penalización? ¿Qué objetos saca la reparación voraz? ¿Qué solución da el decodificador?
Abrir: penalización lineal Abrir: reparación voraz Abrir: reparación aleatoria Abrir: decodificador
Ver el resultado
| Tratamiento | Solución evaluada | Peso | Valor | Aptitud |
|---|---|---|---|---|
| Penalización lineal | 1 1 0 1 1 0 | 18 (infactible) | 22 | 22 - 2 \times 8 = 6 |
| Penalización cuadrática | 1 1 0 1 1 0 | 18 (infactible) | 22 | 22 - (2 \times 8)^2 = -234 |
| Reparación voraz | 1 0 0 1 0 0 | 7 | 9 | 9 |
| Reparación aleatoria | 0 1 0 0 0 0 | 5 | 6 | 6 |
| Decodificador | 1 1 0 0 0 0 | 8 | 10 | 10 |
Mostrar aquí la herramienta (reparación voraz)
Mira la penalización con λ = 2: el cromosoma infactible, con valor 22, queda en 6, por debajo del óptimo, 14. Pero con λ = 1 quedaría en 22 - 8 = 14, la misma aptitud que el óptimo: el cromosoma infactible competiría de igual a igual con la mejor solución factible. Es la dificultad de elegir λ.
Reparar no es decodificar. Las dos estrategias terminan evaluando una solución factible, y en el ejemplo las dos parten del mismo cromosoma y dejan fuera objetos marcados con un 1. Pero lo leen de manera distinta. Con la reparación, el cromosoma es la solución: 1 1 0 1 1 0 dice que entran los objetos 1, 2, 4 y 5, y esa selección no cabe. El cromosoma infactible existe, y la reparación lo corrige después; a los factibles no los toca. Con el decodificador, el cromosoma no dice qué objetos entran, sino cuáles hay que intentar meter, en el orden de los genes; el decodificador sigue esas instrucciones con todos los cromosomas, y por eso no hay cromosomas infactibles. El decodificador es la propia decodificación de la sección 3.1, la que pasa del genotipo al fenotipo; la reparación es un paso más, que corrige un fenotipo que no cumple las restricciones. Por eso los resultados pueden ser distintos: la reparación voraz mira todos los objetos que hay dentro y saca los peores, el 5 y el 2; el decodificador va por orden y deja fuera los que llegan cuando ya no caben, el 4 y el 5.
La diferencia se ve mejor con un cromosoma que no se parezca a una selección. En el decodificador de Hinterding (1994, p. 15), que también describen Kozieł y Michalewicz (1999), el cromosoma es una permutación de los objetos, el orden en que se intenta meterlos, y cada objeto entra si cabe. En la mochila del ejemplo, el cromosoma 5 2 1 4 3 6 mete el objeto 5 (peso 6), salta el 2 (el peso llegaría a 11), mete el 1 (9), salta el 4 y el 3, y mete el 6 (10): la solución es 1 0 0 0 1 1, que vale 13. El cromosoma 4 1 3 6 2 5 da el óptimo, 1 0 1 1 0 1. Una permutación no dice por sí sola qué objetos entran, así que no hay nada que reparar: sin el decodificador no hay solución que evaluar.
El decodificador tiene un precio: la redundancia. De los 64 cromosomas del problema, 4 se decodifican en la solución 1 1 0 0 0 0, y 2 en la 1 0 0 1 0 0. En total, los 64 cromosomas dan solo 32 soluciones, todas factibles, y cada una tiene entre 1 y 8 cromosomas.
En la mochila del ejemplo 3.7, el cromosoma 1 1 1 1 0 0 pesa 14 y vale 18. Calcula su aptitud con la penalización lineal con λ = 2, y la solución que da la reparación voraz y la que da el decodificador. ¿Cuál de las dos soluciones factibles vale más? ¿Y el óptimo?
Ver la solución
Con la penalización lineal, el exceso es e = 14 - 10 = 4 y la aptitud, 18 - 2 \times 4 = 10.
Para la reparación voraz, las relaciones valor/peso de los objetos que están dentro son 4/3 \approx 1{,}33, 6/5 = 1{,}2, 3/2 = 1{,}5 y 5/4 = 1{,}25. Se saca el peor, el objeto 2, y el peso baja a 9: sale 1 0 1 1 0 0, con peso 9 y valor 12.
El decodificador mete los objetos 1 (peso 3), 2 (8) y 3 (10), y salta el 4, que daría 14: sale 1 1 1 0 0 0, con peso 10 y valor 13.
Vale más la del decodificador, 13 frente a 12. El óptimo del problema es 14, el del cromosoma 1 0 1 1 0 1.3.11 Reales fuera de la caja AvanzadoA
Un cruce o una mutación pueden empujar un gen real más allá del límite permitido. ¿Qué se hace con ese punto?
En la representación real, nada impide que un gen salga del intervalo [a, b]. La mutación gaussiana del capítulo 7 o un cruce que extrapola pueden hacerlo. El cromosoma es válido (dos números reales), pero la solución no es factible, porque está fuera de la caja. Sirven las estrategias de la sección anterior: acotar y reflejar son reparaciones, porque cambian el punto por otro de dentro de la caja, y penalizar es una penalización (Padhye et al., 2015). Hay más formas de reparar, como volver a sortear el gen dentro de su intervalo o hacerlo entrar por el límite contrario (Padhye et al., 2015). Veremos las tres más sencillas:
- Acotar. Cada gen que se sale se lleva al límite más cercano (en inglés, set on boundary o clamping). Es la forma más sencilla, y la que usa la mutación gaussiana de mutation-ga.
- Reflejar. Cada gen que se sale rebota en el límite que ha cruzado, y vuelve a entrar tanta distancia como se había salido.
- Penalizar. El punto no se cambia: se evalúa tal cual y se le suma a la función un castigo proporcional a la distancia d a la caja. Exige poder calcular f fuera de la caja, y en un problema real eso puede no tener sentido: una longitud negativa o una dosis imposible no tienen un valor que evaluar.
Datos. La función de Himmelblau en [-5, 5]^2 y el cromosoma real (6{,}3;\ -1{,}2). El gen x_1 está fuera de la caja, a una distancia d = 1{,}3. La penalización usa λ = 10 y suma \lambda\, d a f.
Predice. ¿Qué punto se evalúa con cada tratamiento, y qué aptitud sale?
Abrir: acotar Abrir: reflejar Abrir: penalizar
Ver el resultado
| Tratamiento | Punto evaluado | Aptitud |
|---|---|---|
| Acotar | (5; −1,2) | 164,15 |
| Reflejar | (3,7; −1,2) | 5,68 |
| Penalizar | (6,3; −1,2) | 756{,}25 + 10 \times 1{,}3 = 769{,}25 |
Mostrar aquí la herramienta (reflejar)
Cada tratamiento tiene sus consecuencias. Con acotar, todos los genes que se salen por el mismo límite toman el mismo valor, el del límite, y la población se acumula en el borde (Helwig et al., 2013, p. 263) y puede perder diversidad; a cambio, funciona muy bien cuando el óptimo está en el borde (Padhye et al., 2015). Con reflejar, los puntos vuelven a entrar a distancias distintas y se reparten por el interior, casi sin sesgo (Helwig et al., 2013, p. 263). Con penalizar, el algoritmo puede explorar fuera de la caja, pero necesita λ y una f que se pueda calcular allí. Que el punto reflejado dé 5,68, mucho mejor que el acotado, es una casualidad de este punto y no una ventaja general de reflejar. La elección no es un detalle: en enjambres de partículas, evolución diferencial y algoritmos genéticos, la forma de tratar los límites cambia mucho los resultados y puede sesgar la búsqueda (Helwig et al., 2013; Padhye et al., 2015).
El cromosoma real (-7{,}2;\ 2) está fuera de la caja [-5, 5]^2. ¿Qué punto se evalúa si se acota? ¿Y si se refleja? ¿Cuánto vale d? ¿Y la aptitud con la penalización de λ = 10? Para calcular f, usa f(x_1, x_2) = (x_1^2 + x_2 - 11)^2 + (x_1 + x_2^2 - 7)^2.
Ver la solución
Acotando, x_1 = -5 y se evalúa (-5;\ 2): f = (25 + 2 - 11)^2 + (-5 + 4 - 7)^2 = 256 + 64 = 320.
Reflejando, x_1 = -5 + 2{,}2 = -2{,}8 y se evalúa (-2{,}8;\ 2): f = (7{,}84 + 2 - 11)^2 + (-2{,}8 + 4 - 7)^2 = 1{,}3456 + 33{,}64 \approx 34{,}99.
La distancia a la caja es d = 2{,}2. Penalizando, f(-7{,}2;\ 2) = 42{,}84^2 + (-10{,}2)^2 \approx 1\,835{,}27 + 104{,}04 = 1\,939{,}31, y la aptitud es 1\,939{,}31 + 10 \times 2{,}2 \approx 1\,961{,}31.- Arrastra el punto del mapa hasta sacarlo de la caja y cambia el tratamiento en Fuera de la caja: Acotar, Reflejar o Penalizar. Observa a qué punto se lleva en cada caso.
- Fíjate en la tabla Los tres tratamientos sobre este punto: ¿cuándo coinciden los tres?
- Sube el λ en Penalizar y observa cuándo la aptitud del punto penalizado supera a la de los otros dos.
3.12 Qué hace buena a una representación AvanzadoA
Hemos visto varias representaciones. ¿Con qué criterios se comparan?
Talbi pide a una representación tres características (Talbi, 2009, p. 35):
- Completitud. Todas las soluciones del problema están representadas. La binaria de la función de Himmelblau no la cumple: solo representa los puntos de una rejilla (sección 3.3).
- Conexidad. Existe un camino de búsqueda entre dos soluciones cualesquiera, en particular hasta el óptimo. Es la primera condición de una buena mutación, que vimos en la sección 7.1.
- Eficiencia. Los operadores deben poder manipular el cromosoma con poco coste en tiempo y espacio. Un cromosoma de 15 bits, como la matriz de la sección 3.9, es más largo que uno de 5 enteros para el mismo problema.
Y distingue tres tipos de correspondencia entre soluciones y cromosomas (Talbi, 2009, p. 40):
- Uno a uno: cada solución tiene un solo cromosoma y cada cromosoma representa una sola solución. No hay redundancia, como en el vector de enteros de la sección 3.4.
- Uno a muchos: una solución tiene varios cromosomas. La redundancia agranda el espacio de búsqueda y puede afectar a la eficacia de la metaheurística (Talbi, 2009, p. 40). Importa cómo se reparte: si todas las soluciones tienen el mismo número de cromosomas, la redundancia apenas cambia el comportamiento del algoritmo; si unas tienen más que otras, solo ayuda cuando la favorecida es la óptima (Rothlauf y Goldberg, 2003, p. 381). Es el caso de las permutaciones de la sección 3.5, de la matriz binaria con reparación y del decodificador de la mochila.
- Muchos a uno: a un cromosoma le falta información sobre la solución, y varias soluciones comparten el mismo cromosoma. Reduce el espacio de búsqueda. Talbi la asocia a las representaciones indirectas, en las que hace falta un decodificador para obtener la solución completa (Talbi, 2009, pp. 40–41). Se usan mucho en problemas con muchas restricciones, como los de planificación, porque el decodificador puede garantizar que la solución es válida (Talbi, 2009, p. 41). Pero un decodificador no tiene por qué ser de muchos a uno: el de la mochila es de uno a muchos, porque cada cromosoma da una sola solución y una misma solución sale de varios cromosomas. Ojo con los nombres, que no son uniformes: Hinterding (1994, p. 17) llama «muchos a uno» a su decodificador, porque cuenta en el otro sentido, muchos cromosomas para una solución.
La tabla resume los casos del capítulo con los números que hemos comprobado:
| Representación (problema) | Cromosomas | Válidos o factibles | Cromosomas por solución |
|---|---|---|---|
| Binaria estándar o Gray (Himmelblau, k = 4) | 2^8 = 256 | Todos dentro de la caja | 1 (solo representa 256 puntos) |
| Vector de reales (Himmelblau) | Continuo | Pueden salirse de la caja | 1 |
| Vector de enteros (asignación, 5 × 3) | 3^5 = 243 | 243 (100 %) | 1 |
| Matriz binaria (asignación, 5 × 3) | 2^{15} = 32\,768 | 243 (0,74 %) | Media de 134,8 tras reparar |
| Permutación (viajante, n = 6) | 6! = 720 | 720 (100 %) | 12 |
| Vector de bits (mochila, n = 6) | 2^6 = 64 | 32 (50 %) | 1 tal cual; de 1 a 8 con decodificador |
Para los decodificadores hay cinco condiciones más, que propusieron Palmer y Kershenbaum (1994, p. 380) para representar árboles y que recogen Kozieł y Michalewicz (1999) y Talbi (2009, p. 53): que todo cromosoma dé una solución factible, que toda solución factible tenga algún cromosoma, que sea barato de calcular, que todas las soluciones factibles tengan el mismo número de cromosomas y que haya localidad, es decir, que distancias pequeñas entre cromosomas correspondan a distancias pequeñas entre soluciones. El decodificador de la mochila cumple las dos primeras, pero no la del mismo número de cromosomas: unas soluciones tienen un cromosoma y otras, ocho. Esto significa que, si los cromosomas se eligen al azar, unas soluciones aparecen con más frecuencia que otras simplemente porque tienen más cromosomas. Y la favorecida no es la óptima: 1 0 1 1 0 1 tiene 2 cromosomas, y la que tiene 8 es 1 1 1 0 0 0, que vale 13.
Esa condición es la más discutible: Davis la consideraba demasiado exigente (Kozieł y Michalewicz, 1999). El decodificador por orden de la sección 3.10 no la cumple, y tampoco es completo: sus 720 permutaciones dan solo 8 soluciones, las mochilas en las que ya no cabe ningún objeto más. Pero entre ellas siempre hay un óptimo, porque meter un objeto que cabe nunca baja el valor, y en este problema el óptimo es la solución con más cromosomas: 208 de las 720 permutaciones dan 1 0 1 1 0 1. La localidad pesa más: en la mochila con varias restricciones, Gottlieb y Raidl (2000) encontraron que una buena localidad es necesaria, aunque no suficiente, para que un algoritmo con decodificador funcione bien.
Di si la correspondencia entre soluciones y cromosomas es uno a uno o uno a muchos en cada caso, y por qué: (a) el vector de enteros de una asignación; (b) la permutación de un circuito del viajante; (c) la matriz binaria con reparación; (d) el decodificador de la mochila.
Ver la solución
Uno a uno. Cada asignación es un único vector, y los 243 vectores son 243 asignaciones distintas.
Uno a muchos. Cada circuito de n ciudades lo describen 2n permutaciones (las n rotaciones y las n del sentido contrario); con n = 6, son 12.
Uno a muchos. Con la reparación, cada matriz da una asignación, pero una asignación la dan muchas matrices: en el ejemplo 3.9, 250 de las 32 768 dan 3 2 3 2 1.
Uno a muchos, y además desigual: los 64 cromosomas dan 32 soluciones, y cada una tiene entre 1 y 8 cromosomas. Por ejemplo, 4 dan la solución 1 1 0 0 0 0.
3.13 Ampliaciones Para saber más+
Elegir la representación reduce el espacio. En el problema de las 8 reinas hay que colocar ocho reinas en un tablero de 8 × 8 sin que ninguna ataque a otra. Si el cromosoma es la posición de cada reina, hay más de 4 000 millones de casos; si se obliga a que cada reina esté en una fila distinta, queda 8^8 = 16\,777\,216, y si se les prohíbe también compartir columna, el cromosoma es una permutación y quedan solo 8! = 40\,320 (Talbi, 2009, p. 37). La representación elegida decide de qué tamaño es el espacio que tiene que explorar el algoritmo.
Claves aleatorias. Para usar los operadores de reales con problemas de permutaciones, cada elemento recibe un número aleatorio en [0, 1) y la permutación se obtiene ordenando los elementos según su clave. Con las claves (0{,}72;\ 0{,}15;\ 0{,}48;\ 0{,}91;\ 0{,}33), de menor a mayor son 0,15 (elemento 2), 0,33 (5), 0,48 (3), 0,72 (1) y 0,91 (4), y se decodifica como la permutación 2 5 3 1 4. Cualquier vector de reales da una permutación válida, y así los operadores clásicos no producen cromosomas inválidos (Talbi, 2009, p. 38).
Cuántos símbolos usar. Goldberg propone dos principios para elegir una codificación (Goldberg, 1989, pp. 80–82). El de los bloques constructivos con significado pide que los esquemas cortos y de bajo orden sean relevantes para el problema y poco dependientes de los de otras posiciones. El del alfabeto mínimo pide el alfabeto más pequeño que permita expresar el problema de forma natural, porque el binario ofrece el mayor número de esquemas por bit de información. Es el argumento teórico a favor de la binaria que Holland ya había dado: una cadena binaria de 100 bits contiene muchos más esquemas, 2^{100}, que una cadena decimal de 30 cifras, 2^{30}. Pero Mitchell recuerda que este argumento vale solo en la medida en que valga el análisis de esquemas, y eso se ha discutido. Varias comparaciones empíricas han dado mejores resultados con codificaciones de reales que con binarias, pero depende del problema y no hay reglas rigurosas para predecir cuál funcionará mejor (Mitchell, 1996/1998, apartado 5.2). Davis, con mucha experiencia en aplicaciones reales, recomienda usar la codificación más natural para el problema y diseñar el algoritmo para ella (Mitchell, 1996/1998, apartado 5.2).
Otras representaciones. No todos los cromosomas son cadenas. Los árboles, usados en programación genética, representan expresiones o programas (Talbi, 2009, pp. 39–40), y entre las lineales hay variantes como las codificaciones messy, en las que el valor de un gen no depende de su posición, las que añaden regiones sin efecto, o las diploides (Talbi, 2009, pp. 38–39).
Reparar y devolver. Después de reparar un cromosoma, hay que decidir si el reparado sustituye al original en la población o solo se usa para calcular la aptitud. Talbi llama lamarckiano al primer modelo y de Baldwin al segundo, en el contexto de la búsqueda local dentro de algoritmos híbridos (Talbi, 2009, p. 390), y la misma distinción se usa con la reparación (Salcedo-Sanz, 2009, apartado 2.2). En problemas combinatorios, Orvosh y Davis (1993) observaron que funcionaba mejor devolver a la población solo una pequeña parte de los reparados, en torno al 5 % (Michalewicz y Schoenauer, 1996, apartado 3.3.3; Coello Coello, 2002, apartado 4); en la mochila, en cambio, Michalewicz y Arabas (1994, p. 140) no vieron que esa proporción influyera. En optimización de funciones, Whitley et al. (1994, pp. 6, 15) vieron que, en algunas funciones, el modelo de Baldwin llegaba al óptimo global, aunque más despacio, donde el lamarckiano se quedaba en un óptimo local; en problemas fáciles, el lamarckiano era muy eficaz.
Adaptar la codificación. Para un problema difícil no se sabe, de antemano, cuál es la mejor codificación: encontrarla es casi tan difícil como resolver el problema. Por eso se ha propuesto que el algoritmo adapte la codificación a la vez que busca, por ejemplo con el operador de inversión de Holland, que cambia el orden de los genes para que los relacionados se queden juntos (Mitchell, 1996/1998, apartado 5.3).
Más lecturas. Un libro dedicado por entero al tema es Rothlauf (2006).
Resumen
- La representación fija cómo se escribe una solución. El genotipo (el cromosoma) es lo que manipulan el cruce y la mutación; el fenotipo (la solución) es lo que se evalúa; la decodificación pasa del uno al otro.
- Cada tipo de decisión pide su representación: bits para sí o no y para números en un intervalo, enteros para elegir entre opciones, permutaciones para ordenar y reales para variables continuas.
- En la binaria de un número real, la precisión es \Delta = (b - a)/(2^k - 1): cada bit más afina la rejilla, pero también agranda el espacio de búsqueda.
- Un cromosoma válido tiene la estructura de la representación, y una solución factible cumple las restricciones del problema; no son lo mismo. Algunas representaciones absorben las restricciones y otras dejan cromosomas infactibles, que se pueden rechazar, penalizar o reparar; con un decodificador, en cambio, no los hay.
- Una buena representación debería ser completa, conexa y eficiente, y tener localidad: que un cambio pequeño en el cromosoma cambie poco la solución.